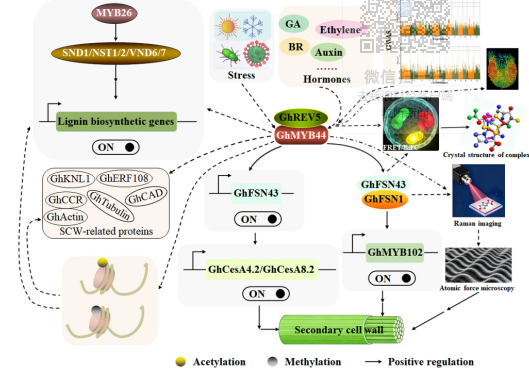
近日,郑州大学/中国科学院微生物研究所的吴家和与郑州大学的赵阁等在Journal of Cotton Research发表题为“Cross-regulation of secondary cell wall formation: a case study on MYB44 in cotton fibers”(次生细胞壁形成的交叉调控:以棉花纤维MYB44为例)的短评,系统综述了棉花次生细胞壁调控领域的突破性研究进展,阐释了由GhMYB44主导的新型四级“MYB–NAC–MYB–结构基因”调控级联通路。
GhMYB44互作蛋白复合物依次激活纤维发育相关关键下游基因,构建起1套高效的“起始—放大—执行”调控体系,该体系为锦葵科植物特有的适应性进化模块。本文同时探讨了当前研究存在的局限,并提出整合多组学技术与种质资源挖掘的后续研究策略。
棉花次生细胞壁生物合成调控机制研究新进展
植物次生细胞壁的功能可归纳为4大核心方面:机械支撑、物质运输、防御保护与能量储存(Zhang等,2018)。次生细胞壁厚度通常为初生细胞壁的数倍,主要由高结晶度纤维素、半纤维素和木质素组成,赋予植物良好的抗拉与抗压性能(Xu等,2023),使茎、木质部导管和纤维细胞能够支撑植物地上部分、抵抗风压,为植株直立生长提供机械支撑(Zhang等,2021)。
在木质部导管和管胞中,次生细胞壁形成环状、螺旋状或纹孔等样式的加厚结构,维持维管组织刚性、防止其塌陷,保障水分与矿质元素的长距离高效运输(Low等,2025)。木质素沉积可形成疏水屏障,抑制病原菌侵染与植食性昆虫取食,同时提高细胞对干旱、盐胁迫及机械损伤的耐受性,保护细胞壁及其内容物(Zhang等,2024)。
次生细胞壁占植物干重的40%以上,是陆地生态系统的重要碳汇,其多糖与木质素可为植食动物和微生物供能,维持全球碳循环(Lehmann等,2025)。此外,次生细胞壁决定植物原料的工业品质:例如棉纤维几乎由纯纤维素构成,其次生细胞壁特征显著影响纺织品品质(Qiao等,2025;Zhang等,2025)。
同样,木材、大麻、竹子的次生细胞壁组分可影响纸浆(5686, -32.00, -0.56%)得率、生物乙醇转化效率和生物复合材料性能,是生物基产业的重要原料(Cao等,2020)。综上,次生细胞壁既是植物的结构“骨架”与“输水管道”,也是碳封存与可持续利用的战略储备载体。
次生细胞壁的合成需要数百个基因在时空上协同调控(Hao等,2024)。植物中存在保守的NAC–MYB层级调控网络:顶层NAC转录因子(如SND1、NST1/2、VND6/7)作为一级主开关,直接激活下游MYB转录因子(如MYB46、MYB83)(图1);后者进一步调控负责纤维素、半纤维素和木质素生物合成的结构基因,形成在不同物种间高度保守的“NAC–MYB–结构基因”三级调控框架(Hunziker等,2024;Xiong等,2025)。
棉纤维在伸长结束后沉积近乎纯的次生细胞壁纤维素(>90%),为解析这一高效调控系统提供了理想的单细胞模型。Hussain等(2026)近期在Journal of Integrative Plant Biology发表的研究,联合转录组、染色质免疫共沉淀测序(ChIP‑seq)、转座酶可及性染色质测序(ATAC‑seq)以及蛋白互作数据,系统鉴定了转录因子GhMYB44的直接靶标。
研究人员通过构建转录因子—靶基因—表型关联矩阵,发现GhMYB44可直接激活棉纤维特异性NAC蛋白GhFSN43,GhFSN43继而上调纤维素合酶基因GhCesA4.2/GhCesA8.2以及次级MYB因子GhMYB102,由此建立 “MYB–NAC–MYB–结构基因”四级层级通路,首次将1个R2R3‑MYB转录因子置于次生细胞壁调控网络的顶层。
借助酵母双杂交(Y2H)、双分子荧光互补(BiFC)、荧光素酶互补等试验,证实上游GhMYB44–GhREV5(Revoluta 5)复合物能够使启动子活性提升约1.4倍;下游GhFSN43–GhFSN1(棉纤维次生细胞壁相关NAC转录因子43)异源二聚体可将次生细胞壁相关基因GhMYB102的表达上调约1.5倍。该“起始—放大—执行”结构保障了次生细胞壁相关基因稳定高效表达。
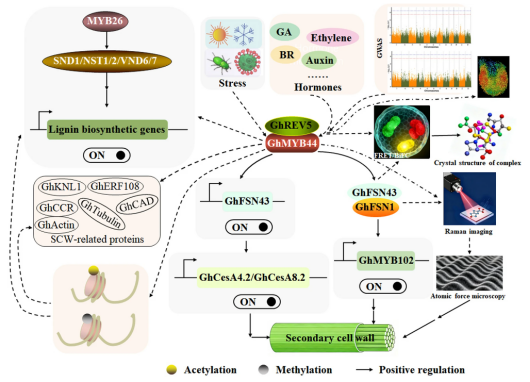
GhMYB44作为靶基因驱动多层协同转录级联以确保棉花次生细胞壁高效合成的可能机制及未来研究方向。GA,赤霉素;BR,油菜素甾醇;GWAS,全基因组关联分析;FRET,荧光共振能量转移;BiFC,双分子荧光互补
电泳迁移率变动分析(EMSA)和酵母单杂交(Y1H)试验证实,GhFSN43 可特异性结合GhCesA4.2与GhCesA8.2的启动子,但不结合其同源基因GhCesA4.3,说明侧翼序列的精细调控决定靶标特异性,避免基因异位表达。敲除GhFSN43虽未产生可见表型,但转录组分析发现多条平行NAC–MYB调控模块发生补偿性上调,表明该网络具备容错结构,可维持发育稳定性。
此外,GhMYB44–GhFSN43的协同作用为锦葵科所特有;单子叶植物及其他双子叶植物采用不同的NAC–MYB 组合,提示该模块是棉纤维大量富集纤维素的适应性演化新机制,为揭示次生细胞壁调控网络的物种特异性分化提供了重要依据。
局限性与未来展望
尽管已取得上述研究突破,但仍存在若干问题。目前虽已明确 GhMYB44‑GhFSN43‑GhCesA4.2/8.2/GhMYB102级联通路,但次生细胞壁形成涉及数百个基因,表观修饰因子、激素信号组分等其他关键调控因子是否与该模块存在互作尚不明确。GhMYB44与其他已报道的次生细胞壁相关转录因子(如 GhKNL1、GhERF108)之间的交叉调控尚未被探索;该模块对半纤维素合成基因(如IRX9/10/14同源基因)、木质素生物合成基因(如CCR、CAD)以及细胞骨架组装相关基因(如肌动蛋白、微管蛋白)是否存在直接调控作用也有待阐明(图1)。
该蛋白复合物内部的调控层级同样亟待解析。现已鉴定得到GhMYB44‑GhREV5与GhFSN43‑GhFSN1等蛋白复合物,但二者组装所处的发育阶段等时空动态特征尚不清楚。借助实时互作成像技术(如荧光共振能量转移(FRET)、BiFC)以及互作结构域的结构生物学研究,可揭示上述蛋白复合物组装的分子作用机制。已知GhMYB44能够影响纤维强度,但仍需开展多尺度分析(如原子力显微镜、拉曼成像),解析该调控模块如何调控纤维素结晶度与微纤丝取向,阐明其对次生细胞壁超微结构的影响,构建“调控基因‑分子结构‑纤维力学性能”的关联分析体系。
现有群体水平数据集缺少基因表达与蛋白互作的单细胞分辨率信息,掩盖了细胞间的异质性,因此需结合单细胞转录组、染色质免疫共沉淀测序以及蛋白互作试验,解析棉纤维细胞中次生细胞壁生物合成精确的时空调控模式。此外,利用棉花自然种质开展分离群体分析与等位基因挖掘,有助于验证该调控模块与高强纤维品种的关联,为分子标记开发提供依据。干旱、盐胁迫等环境胁迫是否会改变上述蛋白复合物的稳定性与调控效率仍有待验证,该方面研究将揭示环境信号、调控网络与最终表型三者间的内在联系。
最后,对比分析棉纤维(以纤维素为主要组分)与拟南芥、杨树等物种木质部组织(同时含有纤维素与木质素)的次生细胞壁调控差异,可明确该模块的保守性与支系特异性分化特征,为仿生材料设计以及多种作物的精准遗传改良提供普适性理论支撑。
该研究为棉花纤维品质精准育种和合成生物学提供了可重复、可量化且跨物种适用的分子工具,并为改良棉花纤维品质、设计新型生物材料以及可持续低碳农业发展奠定了坚实基础。
郑州大学的刘雯雯为论文第一作者,郑州大学/中国科学院微生物研究所的吴家和与郑州大学的赵阁为通信作者。本研究得到棉花品种生物育种项目(2023ZD04041)和国家自然科学基金项目(32272117)的资助。